

On imagine volontiers le cheval dépendant, pour ses vitamines, de ce qu'on met dans sa mangeoire. C'est vrai pour les vitamines liposolubles (A, D, E, K), mais l'histoire des vitamines dites hydrosolubles — les huit vitamines du groupe B et la vitamine C — est radicalement différente. Ici, le cheval est en grande partie son propre fournisseur : son gros intestin abrite une usine microbienne qui synthétise des quantités importantes de vitamines B, et son foie fabrique lui-même sa vitamine C. Comprendre ce système explique pourquoi, chez un cheval sain nourri au fourrage, la plupart des « cures » de vitamines B ou C n'ont aucune base physiologique.
Hydrosoluble contre liposoluble : deux logiques de stockage opposées
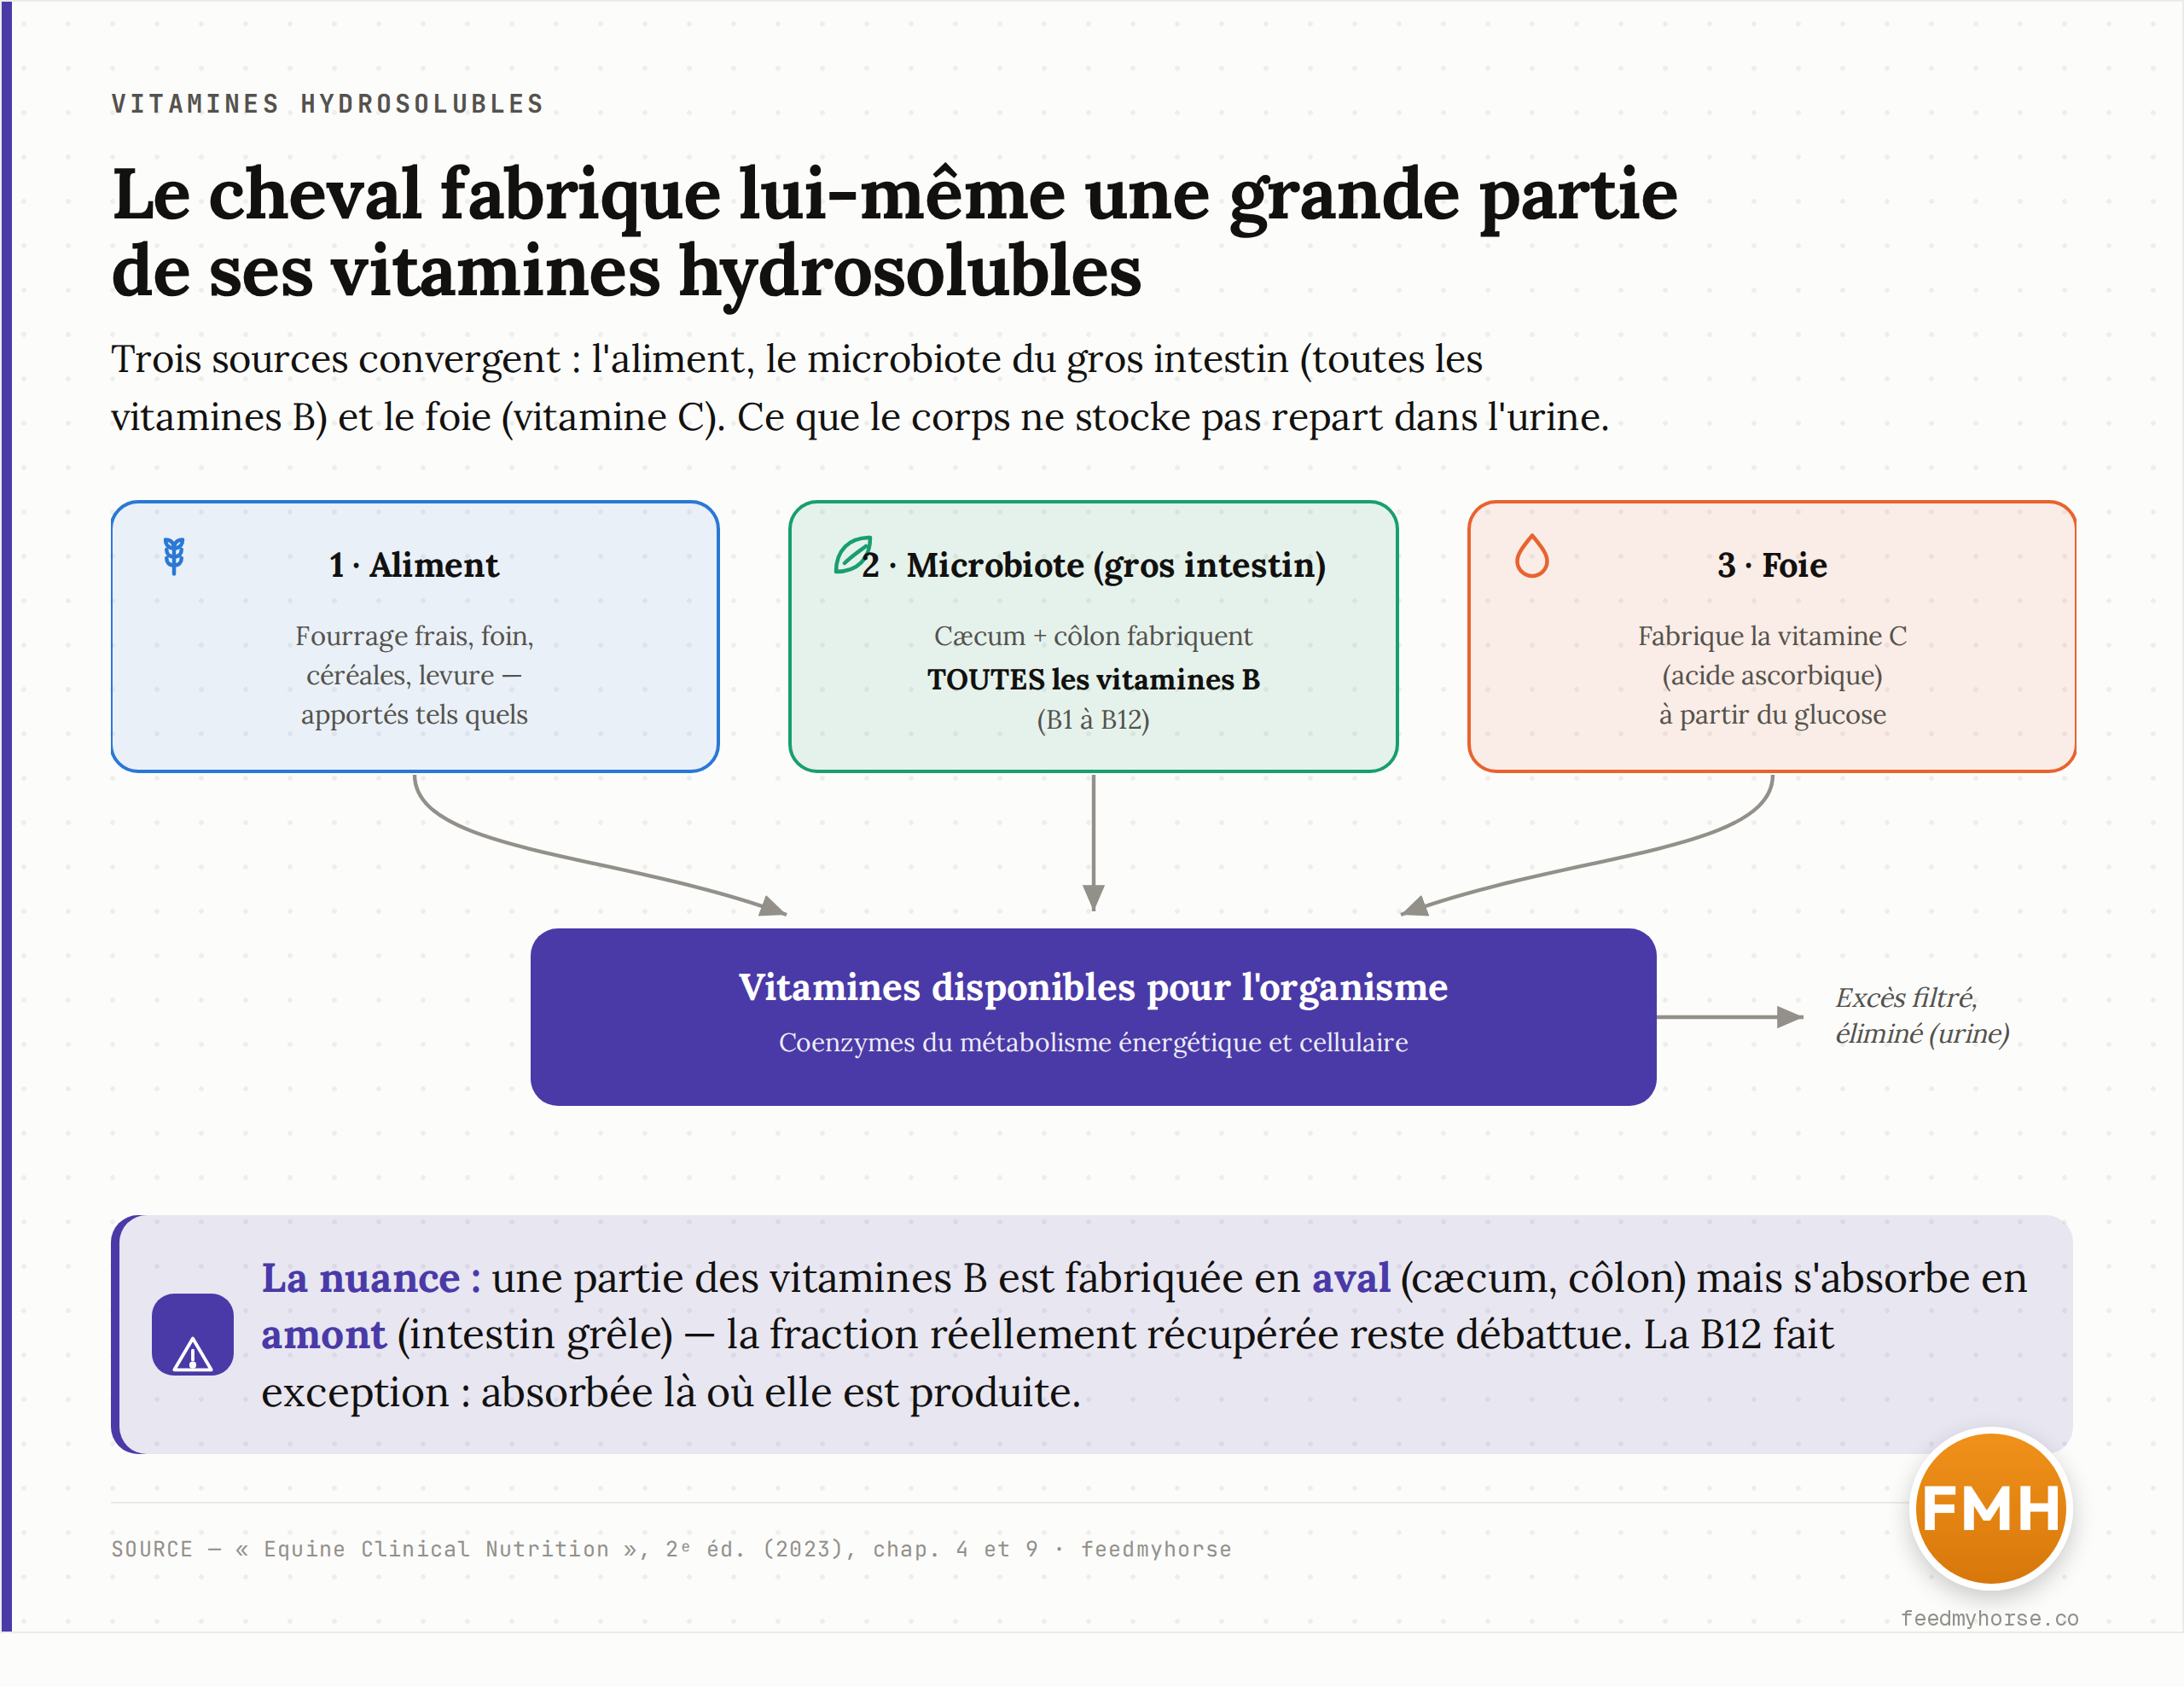
Les vitamines se répartissent en deux familles selon ce qui les dissout. Les liposolubles se dissolvent dans les graisses ; l'organisme peut en constituer des réserves, notamment dans le foie et les tissus adipeux, ce qui les rend aussi utiles que potentiellement toxiques en excès. Les hydrosolubles — solubles dans l'eau — suivent une logique inverse. Elles circulent dans le compartiment aqueux du corps, ne s'y accumulent quasiment pas, et tout surplus est filtré par les reins puis éliminé dans l'urine.
Cette absence de stockage a deux conséquences directes. D'abord, les intoxications sont rares : le trop-plein part dans les urines plutôt que de s'entasser dans les organes. Aucune réaction indésirable n'a d'ailleurs été rapportée après ingestion de fortes doses de la plupart de ces vitamines [1]. Ensuite, et c'est le revers de la médaille, le corps ne peut pas « faire des provisions » : il lui faut un flux régulier. La thiamine (B1) est ainsi l'une des vitamines les moins stockées de l'organisme, rapidement excrétée dans l'urine. Pour un nutriment qui ne se met pas en réserve, la question devient : d'où vient le flux quotidien ?
C'est là que le cheval révèle son atout. Contrairement à nous, il n'a pas besoin de tout puiser dans son assiette.
L'usine microbienne du gros intestin
Le cheval est un herbivore fermenteur. Son caecum et son côlon abritent des milliards de micro-organismes qui, en dégradant les fibres, produisent aussi — comme sous-produit de leur propre métabolisme — la totalité des vitamines du groupe B. À l'exception de la thiamine, aucune des vitamines B n'est un nutriment essentiel pour le cheval, car toutes sont fabriquées par les microbes du caecum et du gros intestin [1]. Cette synthèse concerne la niacine (B3), l'acide pantothénique (B5), la pyridoxine (B6), la cobalamine (B12), le folate (B9), la biotine (B7), auxquels s'ajoutent la thiamine (B1) et la riboflavine (B2).
Le mot « essentiel » a ici un sens technique précis : un nutriment est dit essentiel quand l'organisme ne peut pas le produire et doit donc le trouver dans son alimentation. Dire qu'une vitamine B n'est pas essentielle pour le cheval ne signifie pas qu'elle est inutile — au contraire, ces vitamines sont vitales — mais que le cheval n'a pas besoin qu'on la lui apporte, puisqu'il la fabrique. La relation est symbiotique : le cheval nourrit sa flore en fibres, et sa flore le paie en vitamines. D'où un corollaire : nourrir correctement le microbiote intestinal, c'est-à-dire donner assez de fourrage, est la condition même de ce service [1].
Deux nuances méritent d'être posées d'emblée. La riboflavine (B2) a une recommandation d'apport « suggérée », mais elle manque de preuves d'un besoin alimentaire strict : il est peu probable que le cheval ait besoin qu'on la lui fournisse [1]. Et la thiamine (B1), elle, garde une vraie recommandation alimentaire — non parce que le microbe ne la produit pas, mais parce que cette production seule ne suffit pas à couvrir tous les besoins dans certaines situations. Nous y reviendrons.
Des coenzymes au cœur du moteur énergétique
Pourquoi tant d'attention à des molécules produites en quantités infimes ? Parce que les vitamines B sont des coenzymes : des molécules auxiliaires sans lesquelles certaines enzymes clés ne fonctionnent pas. Elles ne fournissent pas d'énergie elles-mêmes, mais elles rendent possibles les réactions qui en fournissent. On peut les voir comme les clés qui ouvrent les serrures du métabolisme énergétique — sans la clé, la serrure reste bloquée, même si l'énergie chimique est là.
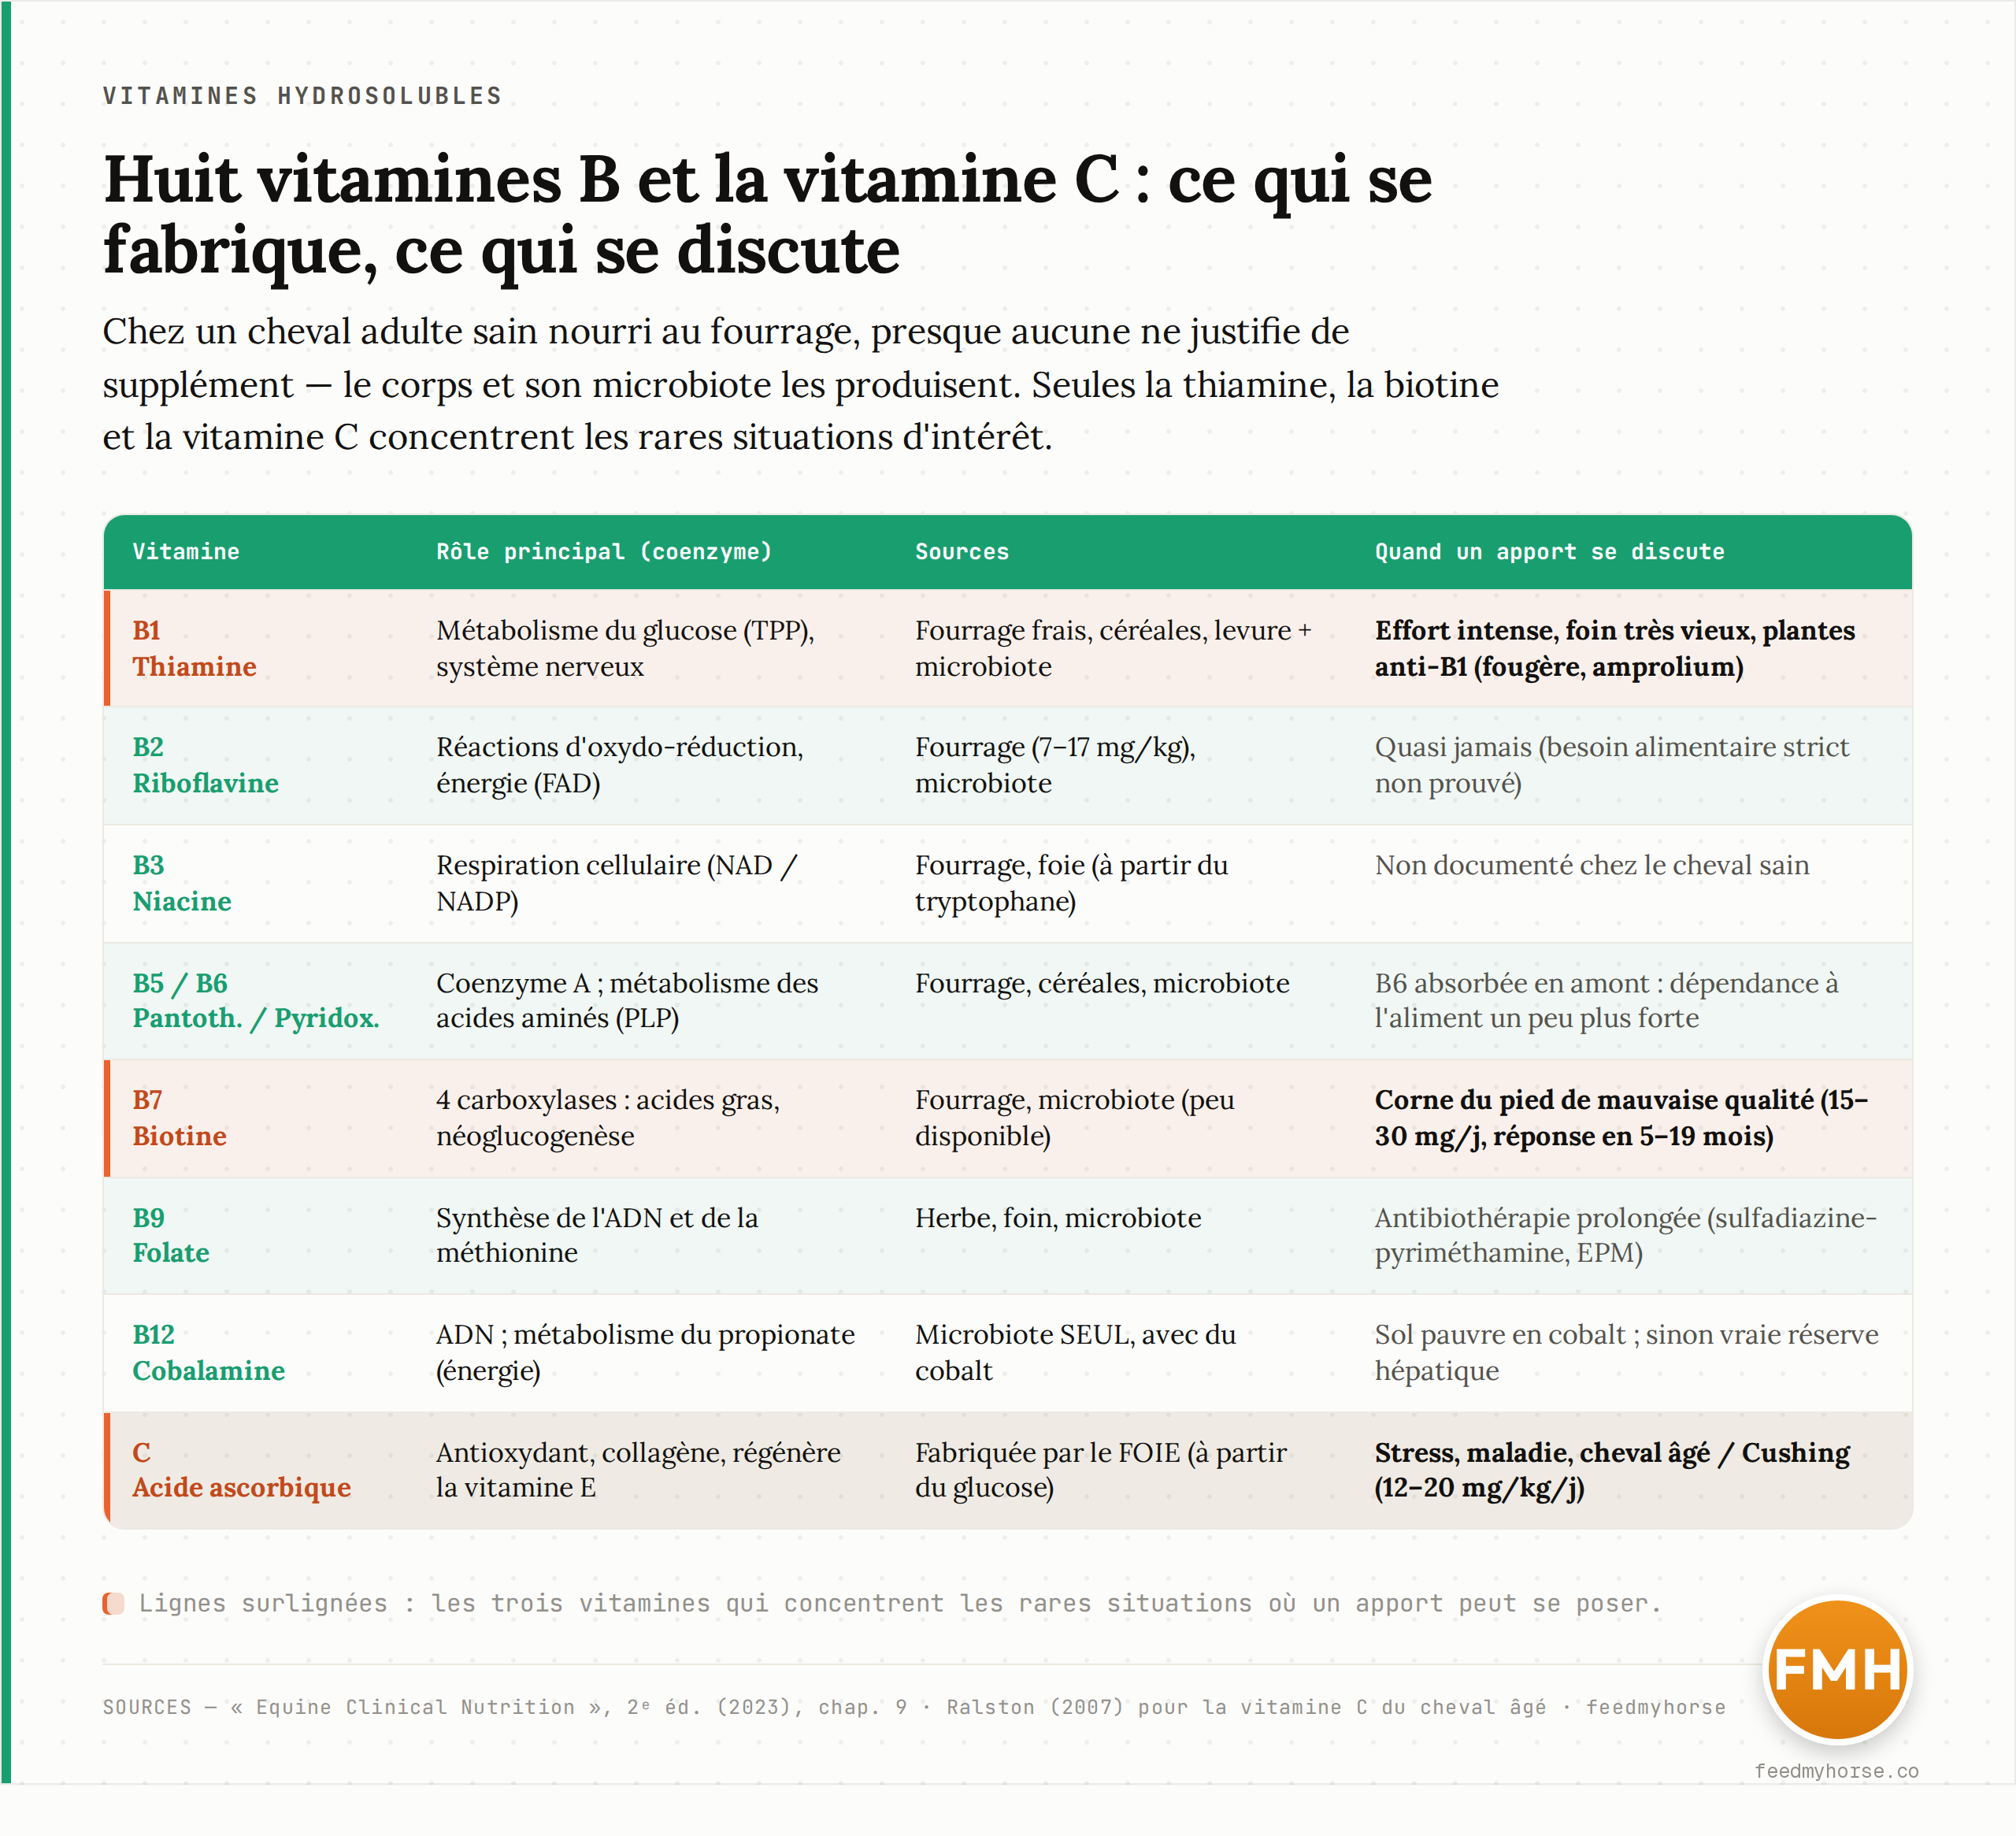
Le détail des rôles est éclairant. La thiamine, sous sa forme active de thiamine pyrophosphate (TPP), intervient dans trois réactions majeures du métabolisme du glucose : la pyruvate déshydrogénase et l'α-cétoglutarate déshydrogénase, nécessaires à la fabrication d'ATP (la monnaie énergétique de la cellule), et la transcétolase. La riboflavine est le précurseur des coenzymes FMN et FAD, qui transfèrent des électrons à la chaîne respiratoire mitochondriale pour produire de l'ATP. La niacine donne les coenzymes NADH et NADPH, indispensables à la respiration cellulaire et au métabolisme des glucides, lipides et acides aminés. La biotine (B7) est le coenzyme de quatre carboxylases impliquées dans la synthèse des acides gras et la néoglucogenèse (fabrication de glucose).
Deux vitamines sortent un peu de ce cadre purement énergétique. Le folate (B9) et la cobalamine (B12) travaillent surtout sur le métabolisme d'un carbone : synthèse de l'ADN, de la méthionine, réplication cellulaire. C'est pourquoi une carence — quand elle survient — touche d'abord les tissus à renouvellement rapide (moelle osseuse, muqueuse intestinale) et peut se traduire par une anémie. La B12 a en outre un rôle proprement équin : elle intervient dans le métabolisme du propionate, un des acides gras volatils issus de la fermentation des fibres, qui est justement une source d'énergie majeure pour le cheval.
La vitamine C, une fabrique hépatique
La vitamine C — l'acide ascorbique — suit un chemin encore plus autonome. Le cheval ne compte pas sur son microbiote pour elle : il la synthétise dans son foie à partir du glucose. C'est pourquoi elle n'est pas non plus un nutriment essentiel, comme chez la plupart des mammifères (l'humain et le cochon d'Inde font partie des exceptions qui ont perdu cette capacité et doivent en consommer).
La vitamine C n'en est pas moins physiologiquement précieuse. C'est l'antioxydant hydrosoluble de référence : elle neutralise les radicaux libres dans le compartiment aqueux, régénère la vitamine E (l'antioxydant liposoluble), et participe à la synthèse du collagène via l'hydroxylation de la proline. Une fois fabriquée ou absorbée, elle se distribue dans l'eau corporelle avec une demi-vie plasmatique très courte, de 3,6 à 8,7 heures seulement chez le cheval — signe d'un turnover rapide, cohérent avec l'absence de stockage.
Un détail d'absorption est instructif. Lorsqu'on donne de la vitamine C par la bouche, elle est absorbée passivement dans l'iléon, et cette absorption diminue quand la dose augmente et quand le cheval vieillit. Autrement dit, plus on en donne, moins la fraction récupérée est grande : gaver un cheval de vitamine C orale se heurte à un plafond physiologique.
La biodisponibilité : le talon d'Achille de la synthèse en aval
Voici la subtilité qui empêche de conclure trop vite que « le cheval fabrique tout ce dont il a besoin ». Il y a un décalage anatomique entre l'endroit où les vitamines B sont produites et l'endroit où elles sont absorbées. La synthèse microbienne se déroule dans le caecum et le côlon, c'est-à-dire en aval du tube digestif. Or l'absorption de plusieurs vitamines hydrosolubles se fait plus en amont, dans l'intestin grêle, qui a déjà été franchi.
Le phénomène se documente vitamine par vitamine [1]. La pyridoxine (B6) est majoritairement synthétisée dans le caecum et le côlon, mais son absorption a lieu surtout dans l'intestin grêle : le cheval dépend donc, pour elle, davantage de l'apport oral que pour les autres vitamines B. Même logique pour la biotine, produite dans le côlon où une partie est absorbée, mais dont l'essentiel de l'absorption se fait plus proximalement dans l'intestin grêle. Résultat : une fraction de ce que les microbes fabriquent est produite « trop tard » pour être récupérée efficacement, et repart dans les crottins.
Cette limite ne vaut pas pour toutes les vitamines. La B12 fait exception : elle est synthétisée dans le côlon, qui est aussi son principal site d'absorption — la production et la récupération coïncident. C'est d'ailleurs la seule vitamine B dont le cheval constitue de vraies réserves hépatiques. La thiamine, elle, présente le cas d'une synthèse jugée « adjuvante » : le cheval absorbe environ 50 % de la thiamine alimentaire, avec une efficacité qui baisse quand la quantité augmente, et la part microbienne complète l'apport sans le remplacer entièrement.
La conclusion honnête est nuancée : la part de la synthèse microbienne réellement disponible pour le métabolisme du cheval reste débattue, faute de mesures directes. C'est justement cette incertitude qui laisse la porte entrouverte à quelques apports ciblés — pas à des cures systématiques.
Un cas d'école : la biotine et la corne du pied
Aucun exemple n'illustre mieux la différence entre « carence » et « réponse à un apport » que la biotine. Le cheval n'a aucun besoin reconnu de biotine alimentaire, et une carence en biotine n'a jamais été décrite chez lui. Pourtant, la supplémentation en biotine est l'une des plus vendues, et pour une raison qui n'est pas totalement infondée.
Plusieurs études ont montré une amélioration de la corne du pied chez des chevaux à sabots de mauvaise qualité supplémentés en biotine : 15 mg/jour chez des pur-sang, 20 mg/jour chez des étalons lipizzans, 30 mg/jour chez des chevaux de trait. Le point crucial est que la biotine plasmatique de ces chevaux avant traitement était dans la fourchette normale : leurs défauts de corne ne résultaient donc pas d'une carence, mais ils répondaient néanmoins à un apport supplémentaire [1]. C'est une distinction fine mais essentielle — on ne corrige pas un manque, on stimule au-delà du besoin.
Les délais rappellent qu'il ne s'agit pas d'une solution miracle. Les premières réponses apparaissent vers 5 à 6 mois, et l'amélioration de la ligne blanche et de l'histologie de la corne a demandé 19 mois de supplémentation continue. Il faut de toute façon 9 à 12 mois pour qu'un sabot se renouvelle entièrement, du bourrelet coronaire à la surface portante. Autre limite importante : la biotine ne semble efficace que pour certains types de défauts. Elle a bénéficié à 3 chevaux sur 3 présentant un défaut du stratum externum, mais à aucun des 21 chevaux dont le défaut touchait le stratum medium ou internum — ces derniers répondant plutôt à un apport de calcium et de protéines [1]. D'où une prudence indispensable : assurez-vous d'abord que la ration est correcte en protéines et calcium, et que les pieds sont bien parés, avant de miser sur la biotine [1].
Ce que ça change en pratique
L'implication centrale est claire : un cheval adulte, sain, nourri au fourrage de qualité (herbe fraîche ou foin correct) n'a normalement pas besoin de supplément de vitamines B ou C. Il les fabrique, et son alimentation apporte le reste. Les « cures de vitamines B » données à titre systématique, ou la vitamine C distribuée « pour renforcer les défenses », relèvent le plus souvent d'une projection de nos propres réflexes humains — nous qui, nous, ne synthétisons ni nos vitamines B en quantité utile ni notre vitamine C.
Quelques situations, bien délimitées, justifient qu'on se pose la question. La thiamine (B1) est la seule à garder une recommandation alimentaire : le foin très vieux en perd environ 50 % en six mois, l'effort intense élève les besoins, et certains antagonistes détruisent la vitamine — la fougère-aigle (via une thiaminase et l'acide caféique) et l'amprolium, un anticoccidien. Le jeune poulain, dont la flore intestinale n'est pas encore mature, ne bénéficie pas pleinement de la synthèse microbienne. Un traitement antibiotique oral prolongé peut perturber la flore et, pour le folate, l'association sulfadiazine-pyriméthamine (utilisée contre la myéloencéphalite protozoaire) est un facteur de risque documenté. La B12 ne pose problème que si le cobalt manque dans le sol, puisque ce minéral est indispensable à sa synthèse microbienne. Enfin, la vitamine C peut se discuter sous stress marqué ou maladie : une dose de 12 à 20 mg/kg/jour s'est révélée sûre au long cours, et le cheval âgé atteint de dysfonction hypophysaire (Cushing) présente un ascorbate plasmatique abaissé — un travail non publié a observé une meilleure réponse vaccinale sous 0,02 g/kg deux fois par jour, sans que l'efficacité soit démontrée [3].
Ces pistes partagent un trait : ce sont des exceptions, appuyées sur des données souvent limitées (petits effectifs, résultats parfois non publiés ou extrapolés d'autres espèces). Elles confirment la règle plutôt qu'elles ne l'infirment. Le cheval reste, pour ses vitamines hydrosolubles, un animal remarquablement autonome — à condition qu'on nourrisse d'abord son fourrage, et donc son microbiote.
À retenir
- Les vitamines hydrosolubles (groupe B et vitamine C) ne se stockent quasiment pas : l'excès part dans l'urine, ce qui rend les intoxications rares mais impose un flux régulier.
- Le microbiote du caecum et du côlon synthétise toutes les vitamines B ; le foie fabrique la vitamine C à partir du glucose. Aucune de ces vitamines n'est un nutriment « essentiel » au sens strict (la thiamine gardant une recommandation d'apport).
- Nuance : une partie de la synthèse microbienne a lieu en aval de l'intestin grêle, où plusieurs vitamines s'absorbent — la fraction réellement récupérée reste débattue.
- Un cheval adulte sain au fourrage n'a normalement pas besoin de supplément B ou C : la plupart des cures sont injustifiées.
- Cas particuliers à discuter : jeune poulain, effort intense, foin très vieux ou antagonistes (fougère, amprolium) pour la B1, antibiothérapie prolongée, cheval âgé/Cushing pour la C, et biotine pour certains défauts de corne (15–30 mg/j, réponse en 5 à 19 mois).
Sources
- Equine Clinical Nutrition, 2ᵉ éd., R. J. Geor, P. A. Harris & M. Coenen (dir.), 2023.
- Nutrient Requirements of Horses, National Research Council (NRC), 6ᵉ éd. révisée, 2007.
- Evidence-based Equine Nutrition, S. L. Ralston, 2007.
- Manual of Equine Nutrition and Feeding Management, C. Z. Buckhout & B. E. Lindberg, 2022.