

Chaque fois qu'un cheval galope, ses cellules brûlent des nutriments pour produire de l'énergie — et cette combustion crache au passage des molécules corrosives, les radicaux libres, capables d'abîmer les membranes de ses propres cellules. Face à cette menace permanente, l'organisme déploie une défense à deux étages où la vitamine E et le sélénium travaillent en tandem, chacun à un poste précis. Comprendre comment ces deux nutriments se relaient éclaire une maladie redoutable du poulain, la « maladie du muscle blanc », et bien des fragilités musculaires du cheval à l'effort.
Le prix de respirer : les radicaux libres
Tout commence par un paradoxe biologique. Pour vivre, une cellule doit produire de l'énergie, et pour cela elle oxyde ses nutriments — elle les brûle en présence d'oxygène pour en tirer de l'ATP, la monnaie énergétique du corps. Ce métabolisme énergétique transforme les nutriments organiques en gaz carbonique et en eau. Mais la réaction n'est jamais parfaitement propre : au cours de ce processus, une fraction de l'oxygène donne naissance à des radicaux libres, aussi appelés espèces réactives de l'oxygène (ROS pour reactive oxygen species) [1].
Un radical libre est une molécule instable, porteuse d'un électron non apparié, qui cherche désespérément à arracher un électron à ses voisines. C'est un puissant agent oxydant. S'il n'est pas neutralisé, il agresse les constituants de la cellule — ses protéines et surtout ses lipides. Or les membranes cellulaires et les membranes des organites internes sont précisément faites de lipides, riches en acides gras polyinsaturés, ces chaînes grasses souples mais chimiquement fragiles, très sensibles à l'oxydation [2].
Quand un radical libre attaque un acide gras de la membrane, il déclenche une réaction en chaîne : c'est la peroxydation lipidique. Le lipide oxydé devient lui-même un peroxyde, molécule instable qui à son tour se comporte en oxydant et propage les dégâts de proche en proche. Une membrane ainsi rongée perd son étanchéité et sa cellule finit par mourir. Ce mécanisme n'a rien d'anecdotique : il s'emballe précisément quand la production de radicaux augmente, c'est-à-dire à l'effort. L'exercice intensifie l'oxydation des nutriments pour fournir de l'énergie, et augmente donc la charge de radicaux libres que le muscle doit gérer [1].
Une défense à deux étages
C'est ici qu'entre en scène le système antioxydant. L'organisme ne se contente pas d'une seule ligne de défense : il en superpose plusieurs, réparties entre antioxydants liposolubles (la vitamine E), antioxydants hydrosolubles (la vitamine C) et enzymes antioxydantes (la glutathion-peroxydase). Ces acteurs fonctionnent en équipe pour contrôler les effets des radicaux libres [1]. Le point clé, souvent mal compris, est que la vitamine E et le sélénium n'agissent pas au même endroit ni sur la même cible : ils occupent deux étages successifs de la même chaîne de défense.
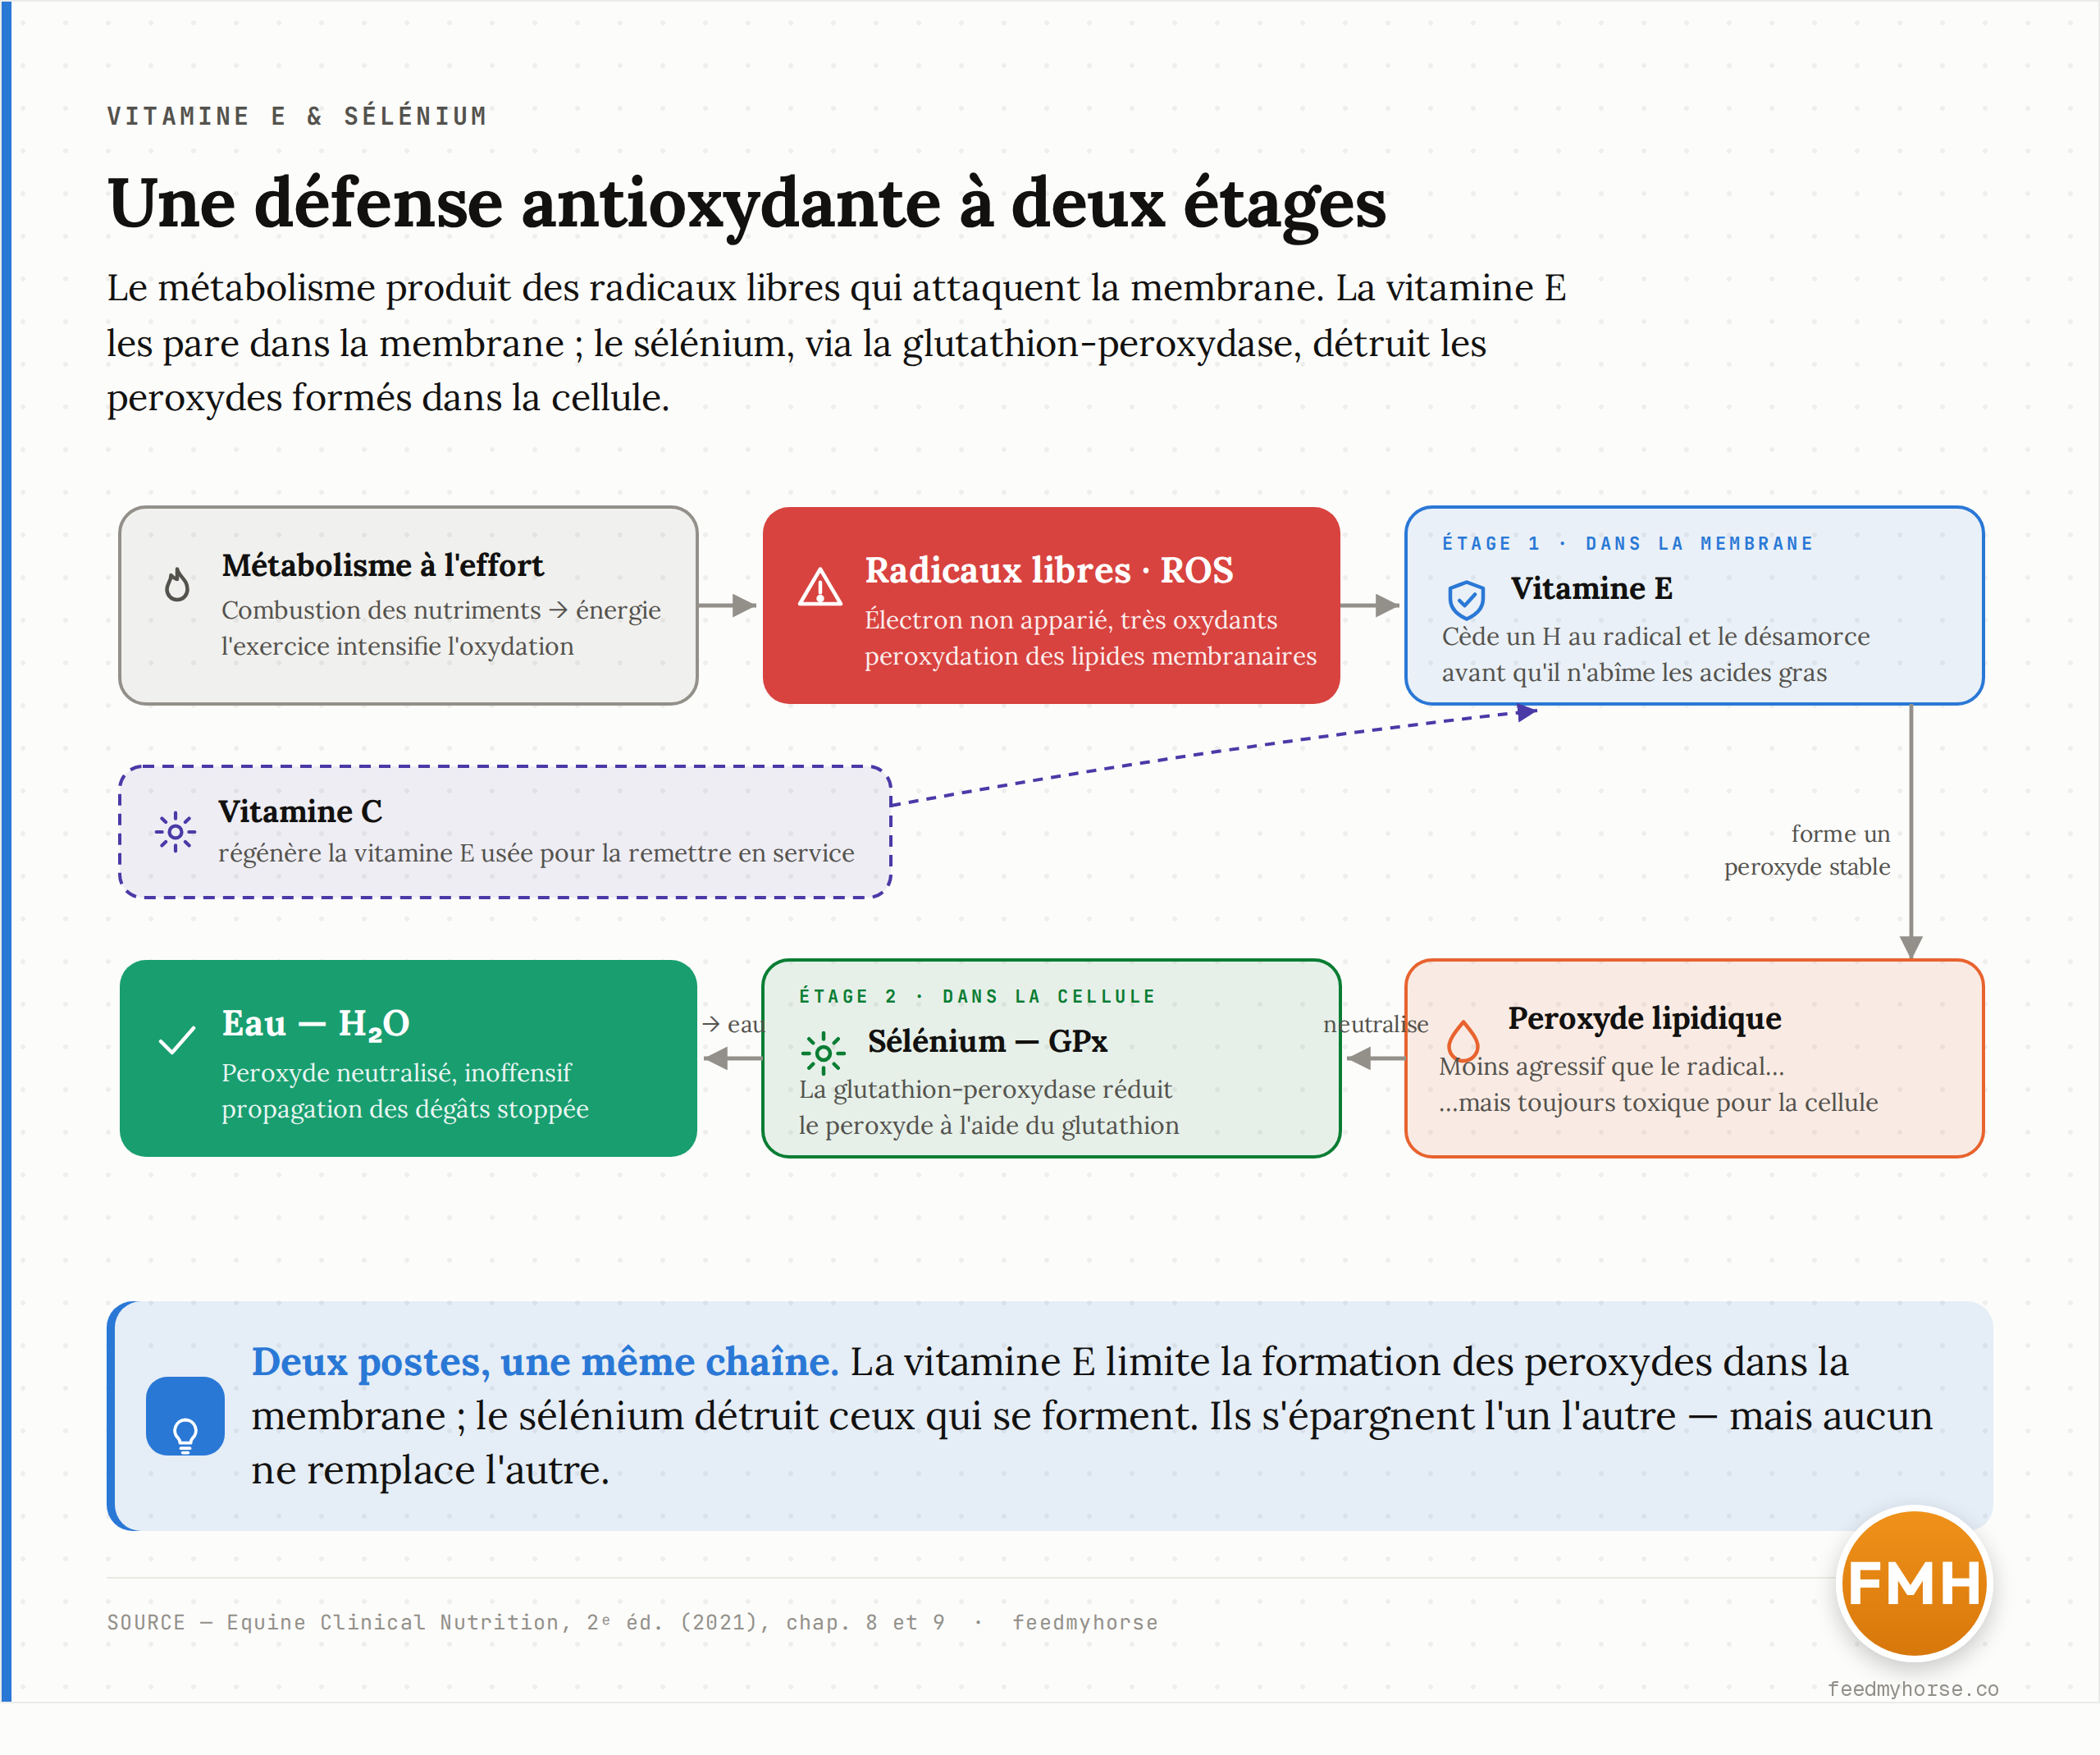
Premier étage : la vitamine E, gardienne de la membrane. Le terme « vitamine E » désigne en réalité une famille de huit molécules apparentées — quatre tocophérols et quatre tocotriénols — dont l'alpha-tocophérol possède de loin l'activité biologique la plus forte [1]. Sa grande particularité est d'être liposoluble : elle se dissout dans les graisses et s'incorpore directement au cœur des membranes cellulaires, là où le danger se produit. Elle y joue le rôle du garde du corps posté au bon endroit. Quand un radical libre menace un acide gras de la membrane, la vitamine E lui cède un atome d'hydrogène issu de son groupe phénol, ce qui stabilise le radical avant qu'il ne déclenche la réaction en chaîne. Le radical dangereux est ainsi désamorcé ; il se forme à la place un peroxyde lipidique stable et un radical tocophéryle, bien moins réactif. Une même molécule de vitamine E peut neutraliser deux radicaux avant de devoir être régénérée [1].
Second étage : le sélénium, éboueur des peroxydes. La vitamine E a limité les dégâts, mais elle a laissé derrière elle des peroxydes lipidiques — moins agressifs que les radicaux d'origine, mais toujours toxiques. C'est le travail du sélénium que de les éliminer. Le sélénium n'agit pas seul : il est le cofacteur indispensable de la glutathion-peroxydase (abrégée GSH-Px ou GPx), une enzyme antioxydante. Chaque molécule de cette enzyme contient quatre atomes de sélénium, enchâssés sous forme de sélénocystéine dans sa structure même. La glutathion-peroxydase travaille dans le liquide intracellulaire : elle utilise le glutathion pour réduire les peroxydes et le peroxyde d'hydrogène en eau, mettant fin à la propagation des dégâts [1]. Là où la vitamine E, dans la membrane, diminue la formation des peroxydes, la glutathion-peroxydase, dans la cellule, détruit ceux qui se sont formés.
On comprend alors pourquoi les deux nutriments sont dits avoir un effet d'épargne mutuelle : plus la vitamine E fait bien son travail à l'étage 1, moins il se forme de peroxydes à traiter à l'étage 2, et inversement. Mais aucun ne remplace l'autre. Des quantités optimales des deux sont nécessaires pour limiter les dommages tissulaires induits par l'oxydation [1]. Il faut d'ailleurs ajouter un troisième larron : la vitamine C (acide ascorbique), qui régénère la vitamine E usée pour la remettre en service — raison pour laquelle vitamine E, sélénium et vitamine C sont décrits comme ayant des activités complémentaires [1].
Quand la défense cède : la maladie du muscle blanc
Que se passe-t-il quand ce système à deux étages tombe en panne, faute de vitamine E et de sélénium ? La réponse porte un nom qui dit tout : la maladie du muscle blanc (white muscle disease), aussi appelée dystrophie musculaire nutritionnelle ou myodégénérescence nutritionnelle. C'est la manifestation la plus caractéristique d'une carence combinée en ces deux nutriments [1].
Le muscle est en première ligne pour une raison mécanique évidente : c'est un tissu à fort métabolisme, qui produit beaucoup de radicaux libres, et ses fibres sont riches en membranes. Privées de leurs deux gardiens, ces membranes subissent une peroxydation lipidique généralisée. Les fibres musculaires dégénèrent, gonflent, se fragmentent, puis se calcifient [1]. À la coupe, le muscle atteint présente des zones blanchâtres de nécrose ischémique et de calcification — d'où le nom de la maladie, ces plages pâles donnant au muscle un aspect crayeux et un toucher granuleux.
Chez le poulain, la forme prédominante frappe le muscle cardiaque et les muscles squelettiques, particulièrement ceux des membres postérieurs, de l'encolure et parfois de la langue, souvent accompagnée de troubles vasculaires — œdèmes et congestion des tissus [1]. L'origine remonte presque toujours à la mère : une jument dont l'alimentation manque de sélénium et de vitamine E pendant la gestation transmet mal ces nutriments à travers le placenta puis dans le colostrum et le lait, et son poulain naît sans réserves suffisantes. Le statut en sélénium de la jument détermine ainsi directement le risque de myopathie chez son produit [1]. Elle se range aux côtés de la maladie du muscle blanc du veau et de l'agneau — c'est bien la même affection à travers les espèces d'élevage [2].
Chez le cheval adulte, la carence prend des formes plus discrètes mais réelles. Quand sélénium et vitamine E viennent à manquer, ce sont les muscles masticateurs ou ceux des membres qui souffrent, aboutissant à une démarche raide et guindée ; on a décrit chez l'adulte de véritables nécroses du muscle masséter associées à un sélénium sanguin bas et à une faible activité de la glutathion-peroxydase [1]. S'y ajoutent la myodystrophie enzootique de l'adulte et une sensibilité accrue aux raideurs et douleurs musculaires pendant ou après l'exercice, voire aux accidents aigus de rhabdomyolyse — le « coup de sang » — pour lesquels une carence en sélénium joue un rôle prédisposant [2].
Vitamine E, muscle et maladies neuromusculaires
Au-delà du muscle blanc, la vitamine E joue un rôle particulier dans le système nerveux, où sa fonction d'antioxydant intracellulaire est essentielle. Une carence prolongée se manifeste alors par des désordres neuromusculaires dont le plus emblématique est la maladie du motoneurone équin (EMND, equine motor neuron disease), à laquelle s'ajoutent la dystrophie neuroaxonale (NAD) et la myéloencéphalopathie dégénérative équine (EDM) [1].
Il faut ici rester prudent. Ces maladies ont des origines complexes, leurs diagnostics se recoupent — l'EDM et la NAD sont cliniquement impossibles à distinguer — et les chercheurs discutent encore de leurs liens exacts. La myopathie par carence en vitamine E pourrait être un stade précoce de l'EMND, ou expliquer pourquoi des chevaux répondent à la vitamine E après avoir été à tort diagnostiqués comme atteints d'EMND [1]. Ce sont des hypothèses, pas des certitudes ; le tableau reste incomplet. Ce qui est établi, c'est que le statut en vitamine E se mesure : au-dessus de 2 µg/mL de tocophérol dans le sang, il est jugé adéquat ; en dessous de 1,5 µg/mL, déficient. Les carences cliniques sévères s'accompagnent de concentrations effondrées, entre 0,04 et 0,56 µg/mL dans les formes aiguës [1].
Chez le cheval à l'effort, sans aller jusqu'à la maladie déclarée, la logique reste la même : plus le travail est intense, plus la production de radicaux augmente, et plus la demande en antioxydants s'élève. C'est pourquoi les apports recommandés en vitamine E grimpent avec le niveau d'exercice — un point sur lequel nous reviendrons.
Pourquoi l'herbe est riche et le foin pauvre en vitamine E
Voici l'un des faits les plus utiles à retenir, et il tient à la nature même de la vitamine E. Elle est présente dans la plupart des aliments du cheval, mais en quantités radicalement inégales. Les fourrages frais, l'herbe verte en pleine croissance, en sont de loin les plus riches : de 100 à 600 UI par kilogramme de matière sèche. Le foin se situe à un niveau intermédiaire, entre 15 et 60 UI/kg. Quant aux granulés de luzerne déshydratée et aux céréales, ils ferment la marche, entre 5 et 80 UI/kg [1].
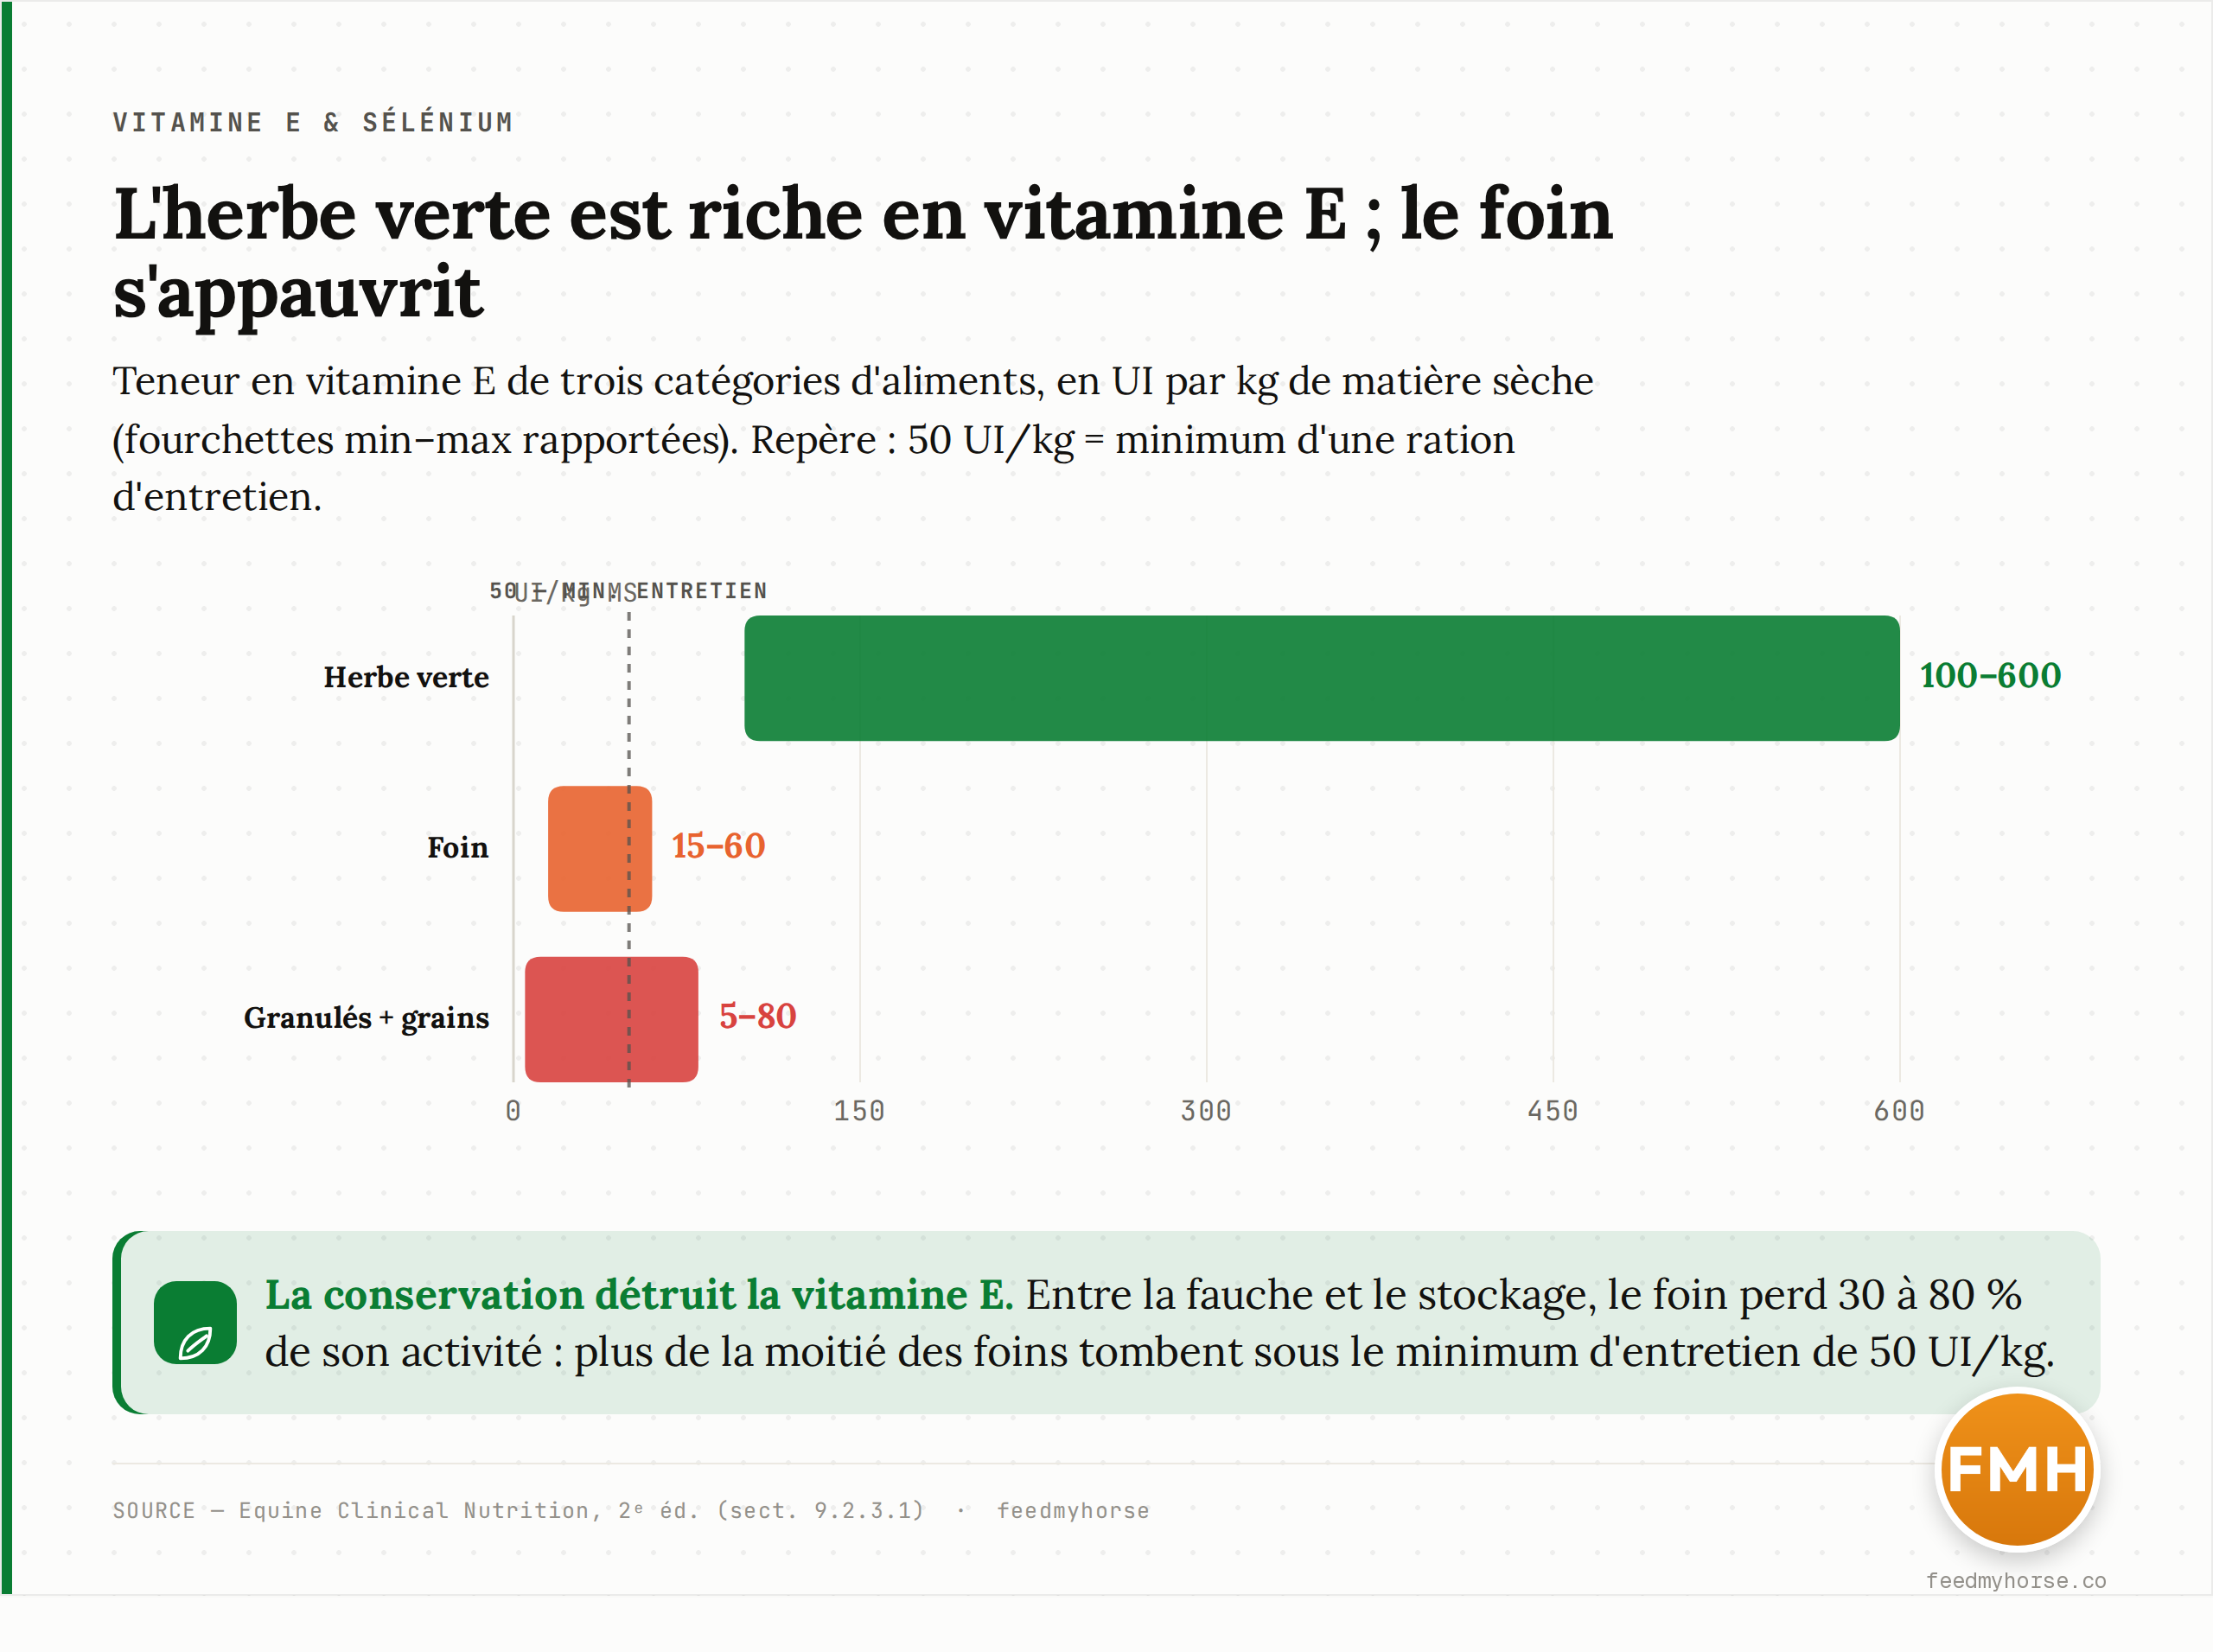
Pourquoi cet effondrement entre l'herbe et le foin ? Deux mécanismes se cumulent. D'abord, la teneur en vitamine E chute avec la maturité de la plante : entre le stade jeune et le stade mûr, les graminées perdent 70 à 90 % de leur vitamine E, et la luzerne 35 à 65 % entre le bouton et la fin de floraison. Ensuite, et surtout, la récolte et le stockage détruisent la vitamine E : de 30 à 80 % de son activité disparaît entre la fauche et la mise en balle, et un stockage prolongé en rajoute — jusqu'à 54 à 73 % de pertes supplémentaires dans une luzerne conservée douze semaines à 33 °C [1]. La vitamine E, molécule oxydable par nature, se dégrade sous l'effet de la chaleur, de la lumière, de l'air et du temps [2]. Sur quarante foins de différentes régions, plus de la moitié affichaient moins de 50 UI/kg — soit sous le minimum d'une ration d'entretien — et seulement 15 % dépassaient 80 UI/kg [1].
La conséquence pratique est limpide : un cheval au pâturage sur de l'herbe en croissance active couvre spontanément ses besoins d'entretien en vitamine E, alors qu'un cheval confiné, ou vivant sous un climat où l'herbe est dormante une partie de l'année, en manque presque à coup sûr [1]. L'ensilage et l'enrubannage, qui conservent l'herbe par fermentation plutôt que par séchage, préservent d'ailleurs mieux la vitamine E que le foin — une piste intéressante hors saison de pâturage.
Pourquoi le sélénium dépend du sol
Le sélénium obéit à une géographie tout aussi implacable, mais pour une raison différente : ce n'est pas la conservation qui compte, c'est le sol où pousse la plante. Fourrages et céréales en contiennent typiquement de 0,01 à 0,3 mg/kg de matière sèche, mais cette valeur varie énormément d'une région à l'autre, car la teneur en sélénium des plantes reflète directement celle du sol [1].
Or les sols sont très inégalement pourvus. Aux États-Unis, une carence en sélénium a été signalée comme un problème d'élevage important dans des régions de 37 États ; à l'inverse, certaines zones des Rocheuses et des Grandes Plaines portent des sols si riches — parfois via des plantes accumulatrices comme les astragales — qu'ils provoquent des intoxications [1]. En France, les zones à risque sont clairement identifiées : les sols primaires du Massif central, des Vosges et des Ardennes, où la carence est connue et la supplémentation obligatoire [2]. Le pH du sol module encore la disponibilité : le sélénium est absorbé plus facilement par les plantes en sol alcalin qu'en sol acide, si bien que chauler un sol acide ou fertiliser peut relever la teneur des fourrages [1].
Quelques chiffres donnent la mesure des besoins. La recommandation de référence est de 0,1 mg de sélénium par kg de matière sèche de ration ; pour un cheval de 500 kg, cela correspond à environ 1,26 mg par jour [3]. Une teneur de 0,3 mg/kg soutient une activité de glutathion-peroxydase plus élevée qu'une ration juste au minimum, mais au-delà de 1 mg par jour aucun bénéfice supplémentaire n'apparaît chez le cheval adulte [1]. La fourchette de besoin s'étend de 0,1 à 0,5 ppm, selon la richesse de la ration en acides gras polyinsaturés et la charge de travail [2] — un léger écart entre références qui rappelle que ces valeurs sont des repères, non des vérités absolues.
Compléter, oui — mais le sélénium ne pardonne pas
Puisque le foin appauvri et les sols carencés sont la règle plus que l'exception, la supplémentation se justifie souvent. La vitamine E se prête à cette générosité : elle est remarquablement sûre, tolérée jusqu'à 20 UI/kg de poids vif et par jour, et les besoins réels grimpent avec l'effort — de 1,6 à 2,0 UI/kg/jour pour le cheval au travail, vraisemblablement 6 à 7 UI/kg/jour pour un travail intense, contre un socle d'entretien couvert par une ration à 50 UI/kg [1]. Rien n'interdit d'être large.
Le sélénium, lui, ne pardonne pas. Sa fenêtre de sécurité est étroite : utile à 0,1 mg/kg, il devient toxique à des doses à peine plus élevées. L'intoxication chronique (la « maladie alcaline » : chute des crins, déformation puis perte des sabots, cécité, paralysie) peut apparaître à des taux approchant 2 ppm sur quelques semaines, et l'intoxication aiguë dès 3 à 5 ppm [1][2]. L'écart entre la dose utile et la dose dangereuse est donc bien plus resserré que pour la plupart des autres nutriments. Ne multipliez donc pas les sources — sel sélénié, aliments complets, compléments — sous prétexte de prévenir des accidents musculaires chez des chevaux qui ne sont pas carencés [2]. Toute supplémentation en sélénium doit partir d'une évaluation de l'apport total de la ration, idéalement avec un dosage sanguin, et sous conseil vétérinaire. Le mécanisme de cette fenêtre étroite et les repères de dosage sont développés dans l'article « Sélénium : l'étroite fenêtre entre carence et poison », et la place de la vitamine E parmi les vitamines de réserve dans « Vitamines A, D, E, K : pourquoi le cheval peut à la fois faire des réserves et se laisser intoxiquer ».
À retenir
- Le métabolisme, surtout à l'effort, produit des radicaux libres qui oxydent les lipides des membranes cellulaires (peroxydation).
- La défense se joue à deux étages complémentaires : la vitamine E piège les radicaux dans la membrane ; le sélénium, via l'enzyme glutathion-peroxydase, neutralise les peroxydes formés à l'intérieur de la cellule.
- Aucun ne remplace l'autre : ils s'épargnent mutuellement, mais les deux sont nécessaires. Leur carence combinée provoque la myopathie nutritionnelle, ou « maladie du muscle blanc » du poulain.
- L'herbe verte est riche en vitamine E (100–600 UI/kg), mais le foin en perd l'essentiel au séchage et au stockage (souvent < 50 UI/kg). Le sélénium, lui, dépend du sol : sols primaires français et nombreuses régions carencées.
- Compléter en vitamine E est sûr ; le sélénium a une fenêtre de sécurité étroite (toxique dès quelques ppm) et ne doit être ajouté qu'après évaluation de la ration.
Sources
- Equine Clinical Nutrition, 2ᵉ éd., R. J. Geor, P. A. Harris & M. Coenen (dir.), 2023.
- Alimentation du cheval, R. Wolter, 2004.
- Nutrient Requirements of Horses, National Research Council (NRC), 6ᵉ éd. révisée, 2007.